SVT
Agro-VétoTB2026
# Agro-Véto TB — SVT 2026 · Corrigé brut
*Corrigé rédigé par IA (La Belle Copie), non officiel. Signalez toute erreur.*
**Le bois face aux changements environnementaux.** Durée 3 h, calculatrice et documents interdits. L'annexe A3 (annexe A1, reproduction du document 1) n'est pas jointe au sujet disponible : la question 1 est traitée sous forme de liste de légendes.
## Partie A — La croissance du bois en contexte de sécheresse
### Question 1
Légendes à porter sur l'annexe A1 (coupe transversale de tronc de chêne pubescent).
**Image A (échelle centimétrique, organe entier) :**
- au centre, la **moelle** (point sombre) ;
- le **bois = xylème secondaire**, qui occupe presque toute la section ; on y distingue le **duramen** (bois de cœur, plus foncé, central, non conducteur) et l'**aubier** (bois périphérique plus clair, conducteur) ;
- les **cernes annuels** (cercles concentriques) ;
- les **rayons ligneux** (fines lignes radiales claires, larges chez le chêne) ;
- une **fente radiale** de dessiccation ;
- en périphérie, l'**écorce** : rhytidome/suber (liège) à l'extérieur, liber (phloème II) mince à l'intérieur ; la **zone génératrice libéro-ligneuse (cambium)**, invisible à cette échelle, est à la limite bois/écorce.
**Image B (zoom du cadre de A) :**
- **cernes** successifs ; dans chaque cerne, le **bois de printemps (bois initial)** marqué par une couronne de **gros vaisseaux** (pores visibles à l'œil nu : bois à **zone poreuse**), puis le **bois d'été (bois final)** dense, à petits vaisseaux groupés en plages ;
- **limite de cerne** entre le bois final d'une année et le bois initial de la suivante ;
- **rayons ligneux** larges, rectilignes, perpendiculaires aux cernes.
**Image C (microscope optique, carmin vert d'iode, zoom du cadre de B) :**
- **gros vaisseaux du bois initial** (lumière vide de ≈ 0,4 à 0,6 mm à l'échelle indiquée, paroi lignifiée colorée en vert) ;
- **petits vaisseaux** et **fibres** à paroi épaisse lignifiée (vert) ;
- **parenchyme ligneux** et **rayon ligneux** (cellules vivantes alignées radialement) ;
- **limite de cerne** (trait net) : à gauche le bois initial de l'année *n + 1*, à droite le bois final de l'année *n*.
**Le bois est le xylème secondaire (xylème II)** : tissu conducteur de sève brute et de soutien, à parois lignifiées (colorées en vert par le vert d'iode), produit vers l'intérieur par le cambium.
### Question 2
Méthode : en climat tempéré, le cambium fonctionne de façon saisonnière (bois initial clair à grandes cellules au printemps, bois final sombre à cellules étroites en été, arrêt en hiver). Un **cerne = un couple bois initial + bois final = une année**. On compte les cernes le long d'un rayon, de la moelle (bord inférieur de l'image 2.A) jusqu'à l'écorce.
Sur l'image 2.A on dénombre environ 40 cernes.
$$\boxed{\text{âge} \approx 40\ \text{ans (35 à 45 ans)}}$$
C'est un **âge minimal** : la coupe a été faite à une certaine hauteur, les premières années de croissance en hauteur ne sont pas enregistrées ; des cernes très fins ou manquants (années sèches) et des faux cernes peuvent fausser le compte, d'où l'intérêt de compter sur plusieurs rayons.
### Question 3
Les barres « 0,5 mm » des images 1.C et 2.C n'ont pas la même longueur : les grossissements diffèrent et chaque mesure doit être ramenée à sa propre échelle.
| | Chêne pubescent (1.C) | Pin sylvestre (2.C) |
|---|---|---|
| Diversité des cellules | grande : gros vaisseaux, petits vaisseaux, fibres, parenchyme, rayons | faible : presque uniquement des **trachéides**, rayons fins |
| Type de bois | **hétéroxylé** | **homoxylé** |
| Taille des éléments conducteurs | très hétérogène : vaisseaux du bois initial ≈ 0,4–0,6 mm de lumière, petits éléments ≈ 0,02–0,1 mm | homogène : trachéides ≈ 40–70 µm au printemps, plus petites en été |
| Organisation | gros vaisseaux en couronne au début du cerne (zone poreuse), le reste en plages irrégulières | files radiales régulières ; passage net du bois d'été (petites cellules, parois épaisses, vert foncé) au bois de printemps (grandes cellules, parois minces) |
Les plus gros vaisseaux du chêne sont environ **dix fois plus larges** que les trachéides du pin. Le chêne (Angiosperme) répartit les fonctions entre cellules spécialisées (vaisseaux pour la conduction, fibres pour le soutien) ; chez le pin (Gymnosperme, conifère), la trachéide assure à la fois conduction et soutien.
$$\boxed{\text{chêne : bois hétéroxylé à zone poreuse ; pin : bois homoxylé à trachéides}}$$
### Question 4
La sève brute circule passivement dans les éléments conducteurs morts et lignifiés, sous l'effet du gradient de potentiel hydrique créé par la transpiration.
- Chêne : **vaisseaux** de grand diamètre formés d'éléments empilés dont les parois transversales sont **perforées** : tube continu, faible résistance hydraulique.
- Pin : **trachéides** étroites et **closes** (quelques mm de long) ; l'eau passe d'une trachéide à l'autre par les **ponctuations aréolées**, ce qui ajoute une forte résistance.
D'après la loi de Poiseuille, le débit d'un conduit varie comme $r^4$ et la vitesse moyenne comme $r^2$ : à gradient égal, un rapport de diamètre ≈ 10 donne un rapport de débit par conduit ≈ $10^4$. Ce modèle de tube idéal surestime l'écart réel, mais il en donne le sens et explique l'ordre de grandeur.
**Les gros vaisseaux continus du chêne conduisent la sève beaucoup plus vite (10 à 50 m/h) que les trachéides étroites et cloisonnées du pin (1 à 2 m/h).** En contrepartie, les gros vaisseaux sont plus exposés à la cavitation (embolie) en cas de forte tension.
### Question 5
Schéma conventionnel (secteur de coupe transversale de tige de jeune chêne), de l'extérieur vers le centre, avec les figurés imposés :
| Position | Tissu | Figuré |
|---|---|---|
| 1 (externe) | épiderme, ou périderme débutant (couche externe jaune-vert) | épiderme / périderme |
| 2 | parenchyme cortical (rose, avec cellules à tanins), collenchyme probable sous l'épiderme | parenchyme (blanc) ; collenchyme (+) |
| 3 | sclérenchyme péricyclique en arcs discontinus (plages vert foncé) | sclérenchyme (croix) |
| 4 | phloème I écrasé, puis phloème II en files radiales (rose) | phloème I, phloème II |
| 5 | cambium (fine assise entre phloème II et xylème II) | trait épais |
| 6 | xylème II (vert, gros vaisseaux en couronne, rayons) | xylème II |
| 7 | xylème I, contre la moelle | xylème I (noir) |
| 8 (central) | moelle (parenchyme médullaire) | parenchyme (blanc) |
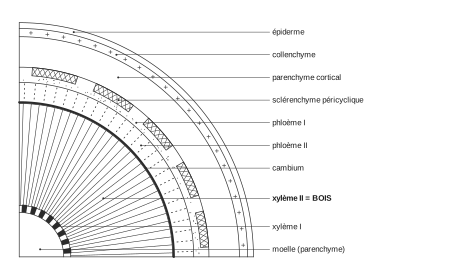
Sur la copie, le schéma porte en plus un titre (« Schéma conventionnel d'une coupe transversale de tige de jeune chêne pubescent en structure secondaire ») et une échelle.
### Question 6
Sur le schéma, on légende **« bois = xylème II »** la couronne à figuré « xylème II » comprise entre le xylème I (à l'intérieur) et le cambium (à l'extérieur). C'est le tissu produit vers l'intérieur par le cambium, dont l'accumulation forme le tronc (document 1).
### Question 7
- **Construction** : charpentes, ossatures, parquets, menuiseries (résistance mécanique).
- **Ameublement et artisanat** : meubles, tonnellerie (merrains de chêne), tournerie, lutherie.
- **Pâte à papier et carton** (cellulose des parois), panneaux de particules et de fibres.
- **Bois-énergie** : bûches, plaquettes, granulés.
(Autres : piquets et clôtures, chimie du bois — tanins, viscose —, charbon de bois.)
### Question 8
**Description** (cerne de 1976, année très sèche ; valeurs ramenées aux barres d'échelle).
| | Témoin (non irrigué) | Irrigué | Rapport |
|---|---|---|---|
| Pin, cerne (ANNÉE) | ≈ 0,03 mm, 2 à 3 cellules | ≈ 0,6 mm, ≈ 30 cellules | ≈ × 20 |
| Pin, PTP / ETE | quelques cellules chacun | ≈ 0,42 / ≈ 0,17 mm | |
| Chêne, cerne (ANNÉE) | ≈ 0,11 mm | ≈ 0,35 mm | ≈ × 3 |
| Chêne, PTP / ETE | ≈ 0,08 / ≈ 0,03 mm | ≈ 0,13 / ≈ 0,21 mm | ≈ × 1,6 / ≈ × 7 |
- Chez les deux espèces, l'irrigation augmente fortement l'épaisseur du cerne de 1976.
- Chez le **pin**, l'effet est massif et touche le bois de printemps comme le bois d'été ; la différence tient d'abord au **nombre de cellules** produites (files radiales de 2–3 cellules contre ≈ 30), la taille des trachéides variant beaucoup moins.
- Chez le **chêne**, l'effet est plus modéré et porte surtout sur le **bois d'été** ; la couronne de gros vaisseaux du bois de printemps est présente dans les deux cas, avec des vaisseaux de taille comparable (bois initial formé au printemps, avant le déficit estival).
**Limites** : une seule coupe, un seul arbre par condition et une seule année ; aucune mesure ni statistique ; échelles différentes d'une image à l'autre (0,1 et 0,2 mm, longueurs de barre variables) ; irrigués et témoins peuvent différer par d'autres facteurs (âge, position, concurrence).
**Mécanisme cellulaire proposé.** L'épaisseur du cerne dépend du fonctionnement du cambium : (1) **divisions** périclines des cellules cambiales (mérèse), (2) **grandissement** des cellules filles par entrée d'eau dans la vacuole, la turgescence étirant la paroi primaire (auxèse), (3) **différenciation** : dépôt de paroi secondaire lignifiée puis mort cellulaire. En sécheresse, $\Psi_{sol}$ baisse, l'arbre absorbe moins d'eau, la turgescence des cellules cambiales et de leurs dérivées baisse et les stomates se ferment (moins de photosynthèse) : moins de divisions et moins de grandissement.
$$\boxed{\text{sécheresse} \Rightarrow \text{turgescence et apports carbonés}\downarrow \Rightarrow \text{moins de divisions cambiales, cellules moins grandes} \Rightarrow \text{cerne mince}}$$
### Question 9
**Analyse du document 5** (épaisseur moyenne des cernes, en 1/100 mm).
- **Chêne** : les irrigués (≈ 100 à 280) restent environ **2 à 3 fois** au-dessus des témoins (≈ 30 à 100) sur tout le siècle, **y compris après 1983** (≈ 100 contre ≈ 50).
- **Pin** : irrigués ≈ 100 à 200, témoins ≈ 50 à 130 jusqu'en 1983 (écart ≈ × 1,5 à 2) ; après l'arrêt de l'irrigation, la courbe des irrigués **rejoint en quelques années** celle des témoins (≈ 30 à 60) ; les années sèches marquent fortement les témoins (≈ 10 en 1921).
- Après 1985, les pins (irrigués ou non) ont des cernes comparables ou inférieurs à ceux des chênes **témoins** (≈ 30 à 70), et nettement inférieurs à ceux des chênes irrigués.
**Conclusion** : la croissance du pin dépend étroitement de l'eau disponible l'année même et ne garde aucun bénéfice de l'irrigation passée ; le chêne maintient sa croissance sans irrigation et conserve un avantage durable. **La plantation de chêne pubescent est la plus adaptée à des sécheresses plus fréquentes.**
**Limites** : un seul site (Valais), courbes moyennes sans effectif ni dispersion ; l'épaisseur des cernes diminue naturellement avec l'âge et le diamètre (tendance du siècle non corrigée) ; incertitude sur l'arrêt de l'irrigation des chênes en 1983 (le texte le suggère, la flèche ne concerne que les pins) ; l'épaisseur de cerne mesure la croissance, pas la survie ; l'arrêt d'irrigation n'équivaut pas à un réchauffement (pas de hausse de température).
### Question 10
Le rapport $\dfrac{\text{diamètre de la lumière}}{\text{épaisseur de la paroi}}$ quantifie le **grandissement cellulaire (auxèse)** des cellules conductrices, rapporté à l'épaississement de leur paroi secondaire lors de la différenciation.
$$\boxed{\text{auxèse (grandissement cellulaire) relativement à l'épaississement pariétal}}$$
### Question 11
**Lecture du document 6.**
- Nombre de cellules produites par an : ≈ 55 à 62 de 1960 à 1973, déclin à ≈ 30–38 de 1976 à 1983 (**déclin amorcé avant l'arrêt**), puis effondrement à ≈ 8–10 entre 1989 et 1994 (÷ 5 à 6 par rapport aux années 1960), remontée transitoire à ≈ 30 en 2001.
- Rapport du bois de printemps : ≈ 8 à 10,5 avant 1983, ≈ 10 à 17 (moyenne ≈ 13) après 1986 : il **augmente**.
- Rapport du bois d'été : ≈ 1,3 à 2,2 avant 1983, plus variable ensuite avec des pointes vers 3 à 4.
**Confrontation au mécanisme de la question 8.**
- « Moins de divisions cambiales » : **validé**, le nombre de cellules chute fortement quand l'eau manque ; cela suffit à expliquer l'amincissement des cernes (document 5).
- « Cellules moins grandes » : **non validé** ; le rapport lumière/paroi augmente au lieu de diminuer : les cellules ne sont pas plus étroites relativement à leur paroi, leur paroi est plutôt plus mince (moins de carbone disponible pour la paroi secondaire).
**Conclusion : la réponse du bois de pin à l'eau passe surtout par l'activité de division du cambium (mérèse), pas par le grandissement cellulaire.** Limites : un rapport ne dit pas si c'est la lumière ou la paroi qui varie ; pas de barres d'erreur ; déclin commencé avant 1983 (vieillissement, sécheresse de 1976).
### Question 12
Le PEG est un polymère hydrosoluble de grande taille, **non absorbé** par les cellules et non toxique. Dissous dans le milieu, il abaisse le potentiel osmotique, donc le **potentiel hydrique du sol** : $\Psi_{sol}$ passe de −0,25 MPa (témoin) à −0,7 MPa. L'eau allant des potentiels élevés vers les potentiels bas, le gradient sol → racine diminue et l'absorption devient plus difficile, comme dans un sol qui s'assèche. Le PEG permet d'imposer une contrainte hydrique **contrôlée, homogène et constante** sans modifier l'aération ni la teneur en eau apparente du milieu.
### Question 13
**Analyse** : en présence de PEG, la file de xylème primaire de la racine compte des vaisseaux supplémentaires (flèches rouges), lignifiés (bleu de toluidine) ; le nombre moyen de cellules de xylème passe de **≈ 3,9 à ≈ 4,8** (+ ≈ 25 %), différence significative. **Un stress hydrique bref augmente la formation de xylème primaire dans les jeunes racines.**
**Comparaison** : dans les troncs (documents 4 à 6), le manque d'eau **réduit** la production de xylème (cernes minces, moins de cellules). Les conclusions sont opposées, mais les situations diffèrent : racine contre tronc, xylème **primaire** (procambium) contre xylème **secondaire** (cambium), plantules de 8 jours contre arbres adultes, stress bref et modéré contre déficit durable. Dans la racine, davantage de vaisseaux améliore la conduction de l'eau : c'est une réponse d'acclimatation.
### Question 14
- **CK** (50 nM) : le nombre de cellules de xylème chute de ≈ 4,1 à ≈ 1,1 (significatif) ; les coupes ne montrent presque plus de cellules lignifiées. Les cytokinines **inhibent** la formation du xylème.
- **JA** (10 µM) : ≈ 4,1 → ≈ 4,6 (significatif), avec des vaisseaux supplémentaires (flèches rouges), comme sous PEG.
- CK/JA : non quantifié.
$$\boxed{\text{l'acide jasmonique (JA) est l'hormone impliquée : il reproduit l'effet du stress hydrique}}$$
### Question 15
Données : sous PEG, l'expression de *LOX2* (gène de réponse au JA) est multipliée par ≈ 38 ; celle d'*ARR15* (gène de réponse aux CK) passe de ≈ 1,0 à ≈ 0,37 (÷ ≈ 2,7).
Schéma fonctionnel (flèche : stimule ; barre : inhibe) :
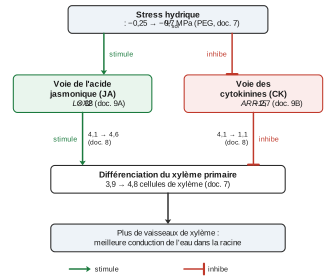
Le stress hydrique active la voie du JA et réprime celle des CK ; les deux effets convergent vers une augmentation du nombre de vaisseaux de xylème. (Une interaction directe CK/JA reste hypothétique, la condition CK/JA n'étant pas quantifiée.)
## Partie B — Le châtaignier face aux changements environnementaux
### Question 16
Une espèce dont un même individu porte des fleurs mâles et des fleurs femelles séparées est **monoïque**.
### Question 17
Le zoom 10.C montre qu'un élément du chaton porte un périanthe réduit et des étamines : c'est **une fleur**. Le chaton (10.A, 10.B) est un axe portant de nombreuses fleurs de ce type. **Le chaton est donc une inflorescence** (épi souple de petites fleurs unisexuées, sans pétales voyants).
### Question 18
- **10.C** : nombreuses **étamines** (filet + anthère jaune), aucun pistil : **fleurs mâles** ; le chaton correspondant (long chaton de 10.A) est un chaton mâle.
- **10.B** : **styles et stigmates** (filaments rouges) surmontant un **ovaire** visible en coupe, entouré d'écailles (cupule), sans étamine : **fleurs femelles**.
### Question 19
Un fruit dérive de l'**ovaire** après fécondation : sa paroi (péricarpe) vient de la paroi ovarienne et il contient la ou les graines issues des ovules.
- 10.B : les fleurs femelles comportent un ovaire contenant des ovules, surmonté des styles, et sont enveloppées par une **cupule** d'écailles.
- 10.D : la **châtaigne** porte à son sommet les **restes des styles** (pointe) ; sa coque brune est le péricarpe ; elle est enfermée dans la **bogue** épineuse, qui dérive de la cupule.
**La châtaigne est issue de l'ovaire de la fleur femelle : c'est un fruit** (fruit sec indéhiscent, akène) ; la bogue n'est pas le fruit mais la cupule accrescente ; la partie comestible est la graine.
### Question 20
- **Présence (11.A)** : Massif central et ses bordures (Limousin, Périgord, Cévennes, Ardèche), Massif armoricain (Bretagne, Pays de la Loire, Normandie), Île-de-France et Sologne, Picardie et Nord (dispersé), piémonts pyrénéen et vosgien, Corse.
- **Absence** : Champagne, Lorraine, Bourgogne, Jura, Alpes, Charentes, Causses, Provence et Languedoc de plaine, haute montagne.
Croisements :
- **Sols (11.C)** : présence sur les brunisols dystriques et alocrisols des massifs cristallins, sur les sols sableux ou limoneux décarbonatés ; **absence sur les sols calcaires** (rendosols, calcosols, calcisols de Champagne, Bourgogne, Charentes, Causses, Provence). C'est le facteur le plus discriminant : **espèce calcifuge**.
- **Températures (11.D)** : présence entre ≈ 10 et 14 °C de moyenne annuelle ; absence en montagne (moyenne inférieure à ≈ 9 °C).
- **Précipitations (11.B)** : présence dans des régions allant de ≈ 600 à plus de 1 200 mm ; facteur moins net (les Alpes, très arrosées, sont vides à cause du froid et des calcaires) ; l'absence des plaines méditerranéennes s'explique par la sécheresse estivale et les sols calcaires.
$$\boxed{\text{facteurs contraignants : nature du sol (calcaire exclu), température (froid d'altitude), sécheresse}}$$
### Question 21
La théorie de la **niche écologique** (niche de Hutchinson : ensemble des conditions du milieu dans lesquelles une espèce peut se maintenir).
### Question 22
Le rectangle (95 % des relevés) couvre les milieux **frais à humides** et **acides**, du très acide jusqu'à la limite de la neutralité. Des points existent en milieu sec (quelques-uns en très sec) et en milieu neutre, mais aucun en milieu basique.
$$\boxed{\text{conditions favorables : milieu acide, frais à humide}}$$
Ces conditions **correspondent** aux conclusions de la question 20 : caractère calcifuge (sols calcaires basiques exclus) et besoin d'une alimentation en eau suffisante. Le document 12 ne renseigne pas sur la température.
### Question 23
**Lien observé (11.C et 13)** :
- sur **granites et gneiss** (Massif central, Vosges, Massif armoricain) : sols d'altération peu différenciés (brunisols dystriques, alocrisols), **acides** : pH < 5,6 dans le Limousin, la Margeride, les Cévennes, les Vosges ; 5,8 à 7 sur le Massif armoricain ;
- sur **sables siliceux** (Landes, Sologne) : podzosols, arénosols, acides ;
- sur **calcaires secondaires et tertiaires** (Bassin parisien oriental, Charentes, Causses, Provence, Jura) : rendosols, calcosols, calcisols, **basiques** (pH > 7, souvent > 8).
**Explication** : le sol se forme par altération de la roche mère.
- Les **silicates** (feldspaths, micas) subissent une **hydrolyse** lente qui libère peu de cations basiques ($\mathrm{Ca^{2+}}$, $\mathrm{Mg^{2+}}$, $\mathrm{K^+}$) ; sous climat humide, ces cations sont **lessivés** ; le complexe argilo-humique se **désature** et fixe $\mathrm{H^+}$ et $\mathrm{Al^{3+}}$ : le sol s'acidifie.
- Le **calcaire** se dissout : $\mathrm{CaCO_3 + CO_2 + H_2O \rightleftharpoons Ca^{2+} + 2\,HCO_3^-}$ ; le complexe est saturé en $\mathrm{Ca^{2+}}$ et les carbonates **tamponnent** l'acidité : sol neutre à basique.
$$\boxed{\text{roche mère} \rightarrow \text{altération et lessivage} \rightarrow \text{saturation du complexe} \rightarrow \text{pH} \rightarrow \text{type de sol}}$$
### Question 24
**Hypothèse** : le châtaignier exige un milieu frais à humide (Q22) et occupe souvent des sols acides filtrants ou peu profonds, à faible réserve en eau. Le réchauffement augmente l'évapotranspiration et la fréquence des sécheresses estivales : dans une grande partie de son aire actuelle, l'arbre sortirait de sa niche hydrique. Le stress hydrique répété (moins de croissance, fermeture des stomates, cavitation des gros vaisseaux d'une espèce à zone poreuse, épuisement des réserves) l'affaiblirait et le rendrait plus sensible aux parasites, d'où une **mortalité excessive**. La remontée de l'espèce vers le nord ou en altitude serait limitée aux stations à sol acide et frais.
### Question 25
**Parasitisme** : le champignon vit aux dépens du châtaignier (+), qui lui fournit habitat et matière organique ; l'arbre subit la destruction du phloème puis du bois, le dépérissement et parfois la mort (−). Relation durable, à bénéfice unilatéral et au détriment de l'hôte : *C. parasitica* est un **parasite pathogène**. L'hôte européen, qui n'a pas coévolué avec lui (contrairement à *C. crenata*, tolérant), est très sensible.
### Question 26
- **Bois sain (15.A)** : structure alvéolaire régulière, nombreuses lumières de cellules (vaisseaux et fibres) de tailles variées, séparées par des parois continues et nettes.
- **Bois malade (15.B)** : les lumières ne sont plus visibles, les parois sont fragmentées en fibrilles désordonnées : le tissu a perdu son organisation et sa cohésion.
**L'infection détruit les parois des cellules du bois** ; conséquences : arrêt de la conduction de la sève brute et perte de résistance mécanique.
### Question 27
#### 27.a
**Cellulose** (polymère de glucose β1→4, microfibrilles) et **lignine** (polymère phénolique qui imprègne la paroi secondaire).
#### 27.b
Le champignon est hétérotrophe et absorbe de petites molécules : il pratique une **digestion extracellulaire**. Ses hyphes **sécrètent des enzymes** (cellulases, enzymes de dégradation de la lignine et des tanins) qui hydrolysent les polymères des parois ; les produits solubles (glucose…) sont **absorbés** et nourrissent le champignon. Les parois, privées de cellulose et de lignine, se délitent : c'est la structure fragmentée du document 15.B.
### Question 28
- **Cellulase purifiée (16.A)** : **témoin positif**. Elle montre l'aspect d'une zone où la cellulose a été dégradée (halo) et prouve que le milieu et la révélation au rouge Congo fonctionnent ; le dépôt d'eau distillée est le témoin négatif. Sans ce témoin, une absence de halo serait ininterprétable.
- **ARNm de l'actine (16.B)** : l'actine est codée par un **gène de ménage**, exprimé de façon constante. Sa détection dans toutes les pistes est un **témoin de charge** : les ARNm ont été extraits et déposés en quantités comparables et l'hybridation a fonctionné. Une absence de *cbh-1* traduit alors une absence réelle de transcription.
### Question 29
- **16.A** : la colonie non infectée est entourée d'un large halo, comme la cellulase purifiée (pas de halo avec l'eau) : elle **sécrète une activité cellulasique** qui dégrade la cellulose du milieu.
- **16.B** : en milieu cellulose, l'ARNm *cbh-1* (1,8 kb) est abondant ; en milieu cellulose + glucose, il est **absent**, alors que l'actine est présente.
**Le champignon utilise la cellulose comme source de carbone grâce à des cellulases sécrétées ; le gène *cbh-1* est induit par la cellulose et réprimé par le glucose** : il ne produit ces enzymes que si aucune source de glucose directement assimilable n'est disponible (régulation transcriptionnelle).
### Question 30
- **16.A** : la colonie infectée ne produit **aucun halo**, comme l'eau distillée : pas d'activité cellulasique.
- **16.B** : pas d'ARNm *cbh-1*, **même en présence de cellulose seule**, alors que l'actine est exprimée.
Le virus **empêche la transcription** du gène de cellulase. Le champignon infecté ne peut plus dégrader la cellulose des parois : il ne progresse plus dans le bois, le chancre reste superficiel et l'arbre survit (**hypovirulence**). De plus, les souches infectées ne se reproduisent plus sexuellement, ce qui limite leur dissémination. L'infection virale est donc un moyen de **lutte biologique** : elle ne tue pas le champignon, elle le rend peu pathogène.
### Question 31
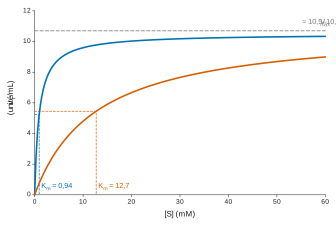
| | Sans acide gallique | Avec acide gallique |
|---|---|---|
| $K_m$ (mM) | 0,94 ± 0,12 | 12,7 ± 0,05 |
| $V_{max}$ (u/mL) | 10,5 ± 0,61 | 10,9 ± 0,81 |
- $K_m$ est multiplié par $12{,}7 / 0{,}94 \approx 13{,}5$, écart très supérieur aux écarts types : **l'affinité apparente de l'enzyme pour son substrat diminue fortement**.
- $V_{max}$ varie de 0,4 u/mL, moins que les écarts types : **$V_{max}$ est inchangée**.
### Question 32
L'acide gallique est un **inhibiteur compétitif** de la tannase. La tannase hydrolyse les tanins galliques en libérant de l'acide gallique : l'acide gallique, **produit** de la réaction et analogue structural du motif galloyle du substrat, se fixe sur le **site actif** et entre en compétition avec le substrat. Il faut plus de substrat pour atteindre la demi-saturation ($K_m$ apparent augmenté : $K_m^{app} = K_m(1 + [I]/K_i)$), mais à saturation le substrat déplace l'inhibiteur et la vitesse maximale est atteinte ($V_{max}$ inchangée).
### Question 33
**Piste** : apporter de l'**acide gallique** (inhibiteur) au niveau des chancres, ou sélectionner des châtaigniers dont l'écorce est riche en acide gallique libre, pour bloquer la tannase du champignon et limiter la dégradation des tissus. Limites : l'inhibition compétitive est levée par un excès de substrat (les tanins sont abondants dans le bois) ; la tannase n'est qu'une des enzymes du champignon (les cellulases ne sont pas visées) ; résultat obtenu *in vitro*.
### Question 34
- **Température** : l'activité augmente jusqu'à 30 °C (agitation thermique, rencontres enzyme–substrat plus fréquentes), puis diminue ; au-delà de 45–50 °C, la **dénaturation thermique** (rupture des liaisons faibles, déformation du site actif) l'annule ; en dessous de 10 °C, l'agitation est trop faible et l'activité minimale.
- **pH** : le pH modifie l'**ionisation** des acides aminés du site actif et du substrat, indispensable à la liaison et à la catalyse ; optimum à pH 5,5 ; aux pH extrêmes (< 2,5 ou > 8,5), la protéine est dénaturée.
L'enzyme est adaptée à un milieu tempéré chaud et légèrement acide (tissus de l'hôte, qui vit sur sols acides) ; un réchauffement rapproche les températures estivales de son optimum et favorise l'activité du champignon.
### Question 35
**Description** : les premiers signalements (avant 1996) se situent dans le **sud-ouest** (Périgord, Quercy, Pays basque, Landes), le sud-ouest du Massif central, les **Cévennes**, la région lyonnaise et la **Corse** ; entre 1996 et 2006, ils gagnent le **Centre**, le Limousin, la Bourgogne, les Pays de la Loire et surtout la **Bretagne** ; de 2007 à 2017, les nouveaux signalements sont surtout dans le **nord-ouest** (Bretagne, Pays de la Loire, Normandie), en Île-de-France, dans le Nord, en Alsace et en Rhône-Alpes. **La maladie progresse du sud vers le nord en une soixantaine d'années.**
**Explications** : dispersion de proche en proche des spores (pluie, vent, insectes, blessures de l'écorce) et transport humain (plants, bois, outils) pour les foyers éloignés ; conditions climatiques devenant plus favorables au champignon vers le nord avec le réchauffement (optimum 30 °C) ; hôtes affaiblis par les sécheresses ; absence de résistance du châtaignier européen. Biais : il s'agit de **signalements** (dépendant de l'effort de surveillance, plus fort dans les régions castanéicoles) et de la présence de l'hôte.
### Question 36
**Prédictions 20.A (1961–1990)** : prévalence forte (jaune à rouge) dans le sud-ouest, le pourtour méditerranéen, la vallée du Rhône et la Corse ; bande verte (0,1–0,2) au centre ; bleu (≤ 0,1) sur toute la moitié nord, la Bretagne et les reliefs.
- **Accords** : les foyers anciens (avant 1996) sont dans les zones prédites favorables (sud-ouest, Cévennes, Corse) ; aucun signalement ancien dans le nord, prédit en bleu.
- **Désaccords** : forte prévalence prédite sur le littoral méditerranéen et la Provence où il n'y a pas de signalement (pas de châtaigniers : le modèle ignore l'hôte) ; signalements nombreux après 1996 en Bretagne, en Normandie, dans le Centre, régions prédites peu favorables.
- **Limites de la comparaison** : périodes différentes (1961–1990 contre 1956–2017, avec un climat qui se réchauffe) ; le document 19 donne des dates de premier signalement, pas une proportion d'arbres malades ; effort de surveillance inégal ; maladie en expansion, pas à l'équilibre.
**Le modèle reproduit le gradient sud-nord, mais il est peu fiable dans le nord-ouest et ne tient compte ni de l'hôte ni de la dispersion.**
### Question 37
- **Doc. 18** (et 17) : activité de l'enzyme selon la température et le pH (optimum 30 °C, gamme 20–45 °C) : réponse du champignon à la température, base d'un modèle fondé sur la température.
- **Doc. 14** : biologie du champignon (spores, infection par blessures, destruction du phloème puis du bois, mort) : définition de l'infection et de l'arbre malade.
- **Doc. 15 et 16** : dégradation du bois par les cellulases, hypovirulence et absence de reproduction sexuée des souches infectées : virulence et capacité de dissémination.
- **Doc. 10** : biologie reproductive de l'hôte (monoïcie, fruits) : régénération et dispersion de l'hôte.
- **Doc. 11, 12, 13** : répartition du châtaignier et ses facteurs (climat, sol, pH, humidité) : carte de l'hôte et variables environnementales.
- **Doc. 19** : historique des signalements depuis 1956 : vitesse de propagation, calibration et validation du modèle.
### Question 38
**20.B (2070–2099)** : prévalence > 0,6 sur la plus grande partie du sud, de l'ouest et du centre (Aquitaine, Massif central, vallée du Rhône, Languedoc, Corse entière, Alsace) ; 0,2 à 0,6 sur la Bretagne, les Pays de la Loire, le Centre et le Bassin parisien ; **0,1 à 0,2 seulement sur le quart nord** (Nord, Picardie, Haute-Normandie, nord de l'Île-de-France, Ardennes, Champagne, une partie de la Lorraine) et sur les reliefs alpins (≤ 0,1 localement), quelques points hauts des Pyrénées, du Massif central et des Vosges.
**Croisement avec 11.A** : régions où le châtaignier est présent et la prévalence prédite faible :
$$\boxed{\text{nord de la France (Normandie, Picardie, Nord, nord de l'Île-de-France, Ardennes) et quelques stations d'altitude}}$$
Les grandes régions castanéicoles actuelles (Limousin, Périgord, Cévennes, Corse, Bretagne) seraient fortement touchées. Prédiction d'un modèle non validé (Q36), pour un seul scénario climatique.
### Question 39
- **Surveillance et prophylaxie** (Q35) : réseau national de signalement à effort homogène ; contrôle de la circulation des plants et du bois ; désinfection des outils, limitation des blessures (doc. 14) ; élimination des arbres à chancres actifs dans les nouveaux foyers.
- **Lutte biologique** (Q30) : inoculation de souches hypovirulentes dans les chancres, en couvrant les différents groupes de souches.
- **Matériel végétal** (Q25, Q32–33) : sélection de châtaigniers tolérants, hybrides avec *C. crenata*, arbres riches en composés inhibiteurs ; maintien de la diversité génétique.
- **Choix des stations** (Q20–24, Q38) : réserver le châtaignier aux sols acides, frais, à bonne réserve en eau ; privilégier les régions du nord, moins exposées ; éviter les stations séchantes.
- **Sylviculture** : peuplements mélangés plutôt que monocultures, éclaircies pour limiter la concurrence pour l'eau, suivi à long terme de la croissance et de la mortalité.
### Question 40
Schéma bilan (flèches = « entraîne ») :
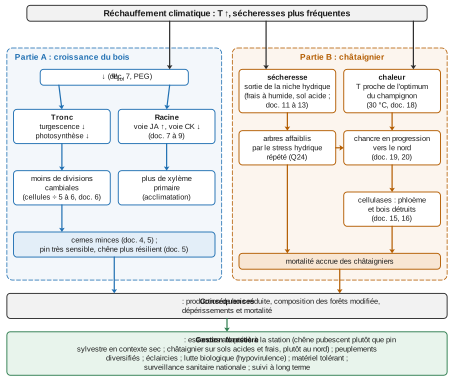
**Le réchauffement agit directement sur la croissance (déficit hydrique, cambium) et indirectement par les pathogènes, favorisés par la chaleur et par l'affaiblissement des arbres ; la gestion doit adapter le choix des essences et des stations et surveiller la santé des forêts.**
Aide sur le corrigé
Connectez-vous pour demander une explication.